能否只改变生物钟的振幅而保持其24小时周期不变?能否让一个合成基因线路根据给定目标振荡改变频率、峰谷或相位,而不必精确复制它在每一时刻的完整波形?针对这些问题,能否像经典控制理论那样,建立一套体系化的数学概念、理论判据与计算方法?
复旦大学智能复杂体系基础理论与关键技术实验室团队围绕这些问题开展研究并于2026年10月1日在《自然-计算科学》(Nature Computational Science)在线发表论文Modulatability of complex oscillators(图1)。该研究从定义可调性概念、建立适定性理论、构建反问题算法到数据驱动应用建立了一套系统框架,为理解自然振荡系统的调控规律和设计合成振荡系统提供了新的视角和工具。
图 1. 发表论文信息。
为什么要调控振荡?
生物系统广泛利用振荡和脉冲传递信息。Elowitz和Leible构建的抑制振荡器(repressilator)开启了合成生物振荡系统的经典范式[1];Tsai等人发现正、负反馈环的耦合有助于获得稳健且频率可调的生物振荡[2];Levine等人阐释了基因线路中脉冲动力学的功能作用[3],Hansen和 O’Shea进一步讨论了转录因子振幅编码和频率编码的信息传递能力[4]。此后,研究者在合成 NF-κB回路中实现可调振荡[5],并通过重新设计网络结构或筛选参数,探索振幅与频率的独立调控[6–10]。近期,金帆与合作者发现细菌第二信使cAMP信号存在使信息传输效率最大化的最优频率,并进一步揭示了细胞将频率编码转换为基因表达水平的机制,表明频率调制能够拓展多基因系统可到达的表达状态[11,12]。这些研究说明,频率、振幅等属性不仅是描述振荡的物理量,也是自然系统编码信息和合成系统实现精细功能设计的重要可调变量。
控制状态还是调控属性?
一个系统能否被控制是控制科学领域的基本问题之一。1960年,Kalman在经典工作中为线性系统的能控性(controllability)提供了严格的数学描述:通过合适的外部输入,系统能否从一个初始状态到达目标状态[13]。此后,能控性理论不断发展并从低维系统拓展至复杂网络。2011年,刘洋彧、Slotine和Barabási将能控性与复杂网络相结合,研究如何寻找能够驱动整个网络的最小节点集合[14],进一步推动了控制复杂网络动力学的研究。
然而,生物振荡系统蕴含着另一类问题。对于昼夜节律、心跳、神经活动、细胞周期或合成振荡,往往并不要求也很难使系统在指定时刻到达某个精确状态,也不要求它逐点追踪一条预设轨迹。真正关心的通常是周期、频率、振幅、峰值、谷值和相位差等时空属性(图2)。例如,昼夜节律的周期能否维持接近24小时,某种蛋白质的最高浓度是否会越过安全阈值,不同振荡单元之间能否保持相位差。由此,自然延伸出一个更适合复杂系统振荡动力学的现代调控问题:能否通过改变系统参数,使系统呈现具有一组指定属性的振荡动力学?研究团队将这一能力称为复杂系统振荡动力学的可调性(modulatability)。研究者们进一步把振荡动力学的调控问题转化为参数空间与属性空间之间的映射问题(图3),以此系统地提出点态可调性(point modulatability)、集合可调性(set modulatability)和路径可调性(path modulatability)三个层层递进的概念。
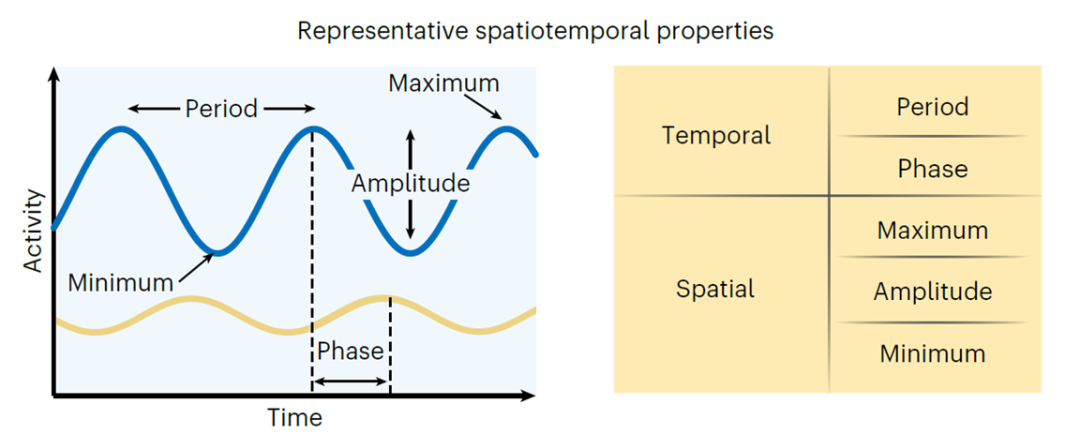
图 2. 振荡的几类时空属性。
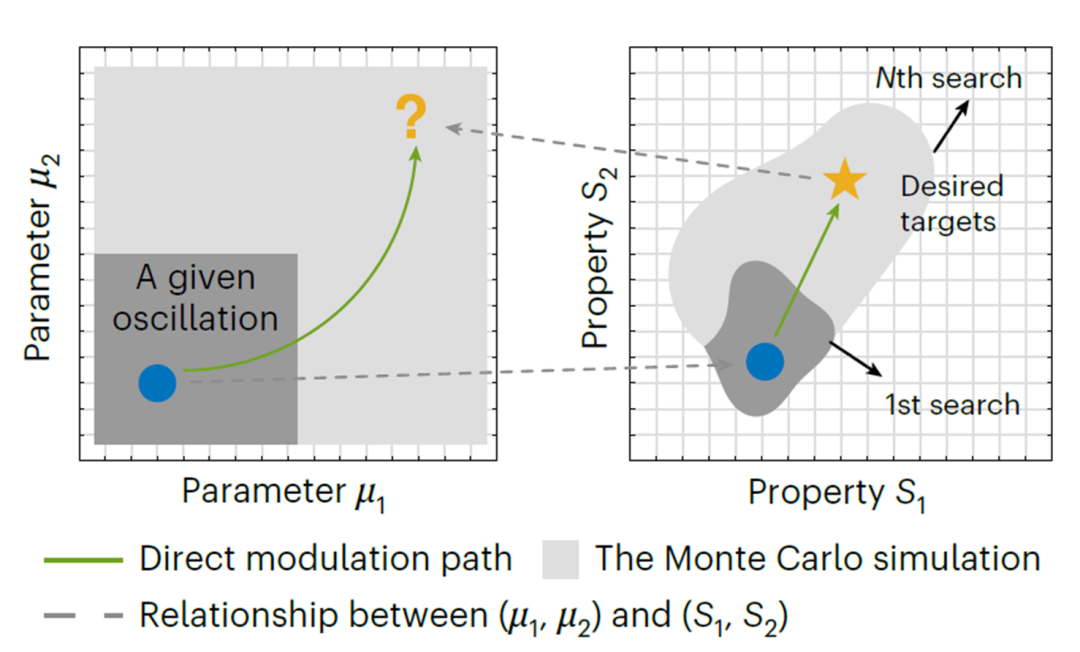
图 3. 参数空间与振荡属性空间的对应关系。
调控参数何时能被唯一确定?
点态、集合和路径可调性分别对应:是否存在一组参数实现一组振荡属性?对于属性空间中的一片区域是否均存在这样的参数?以及一个给定的振荡能否连续地被调控至特定属性?这三个定义共同为后续理论与计算建立了清晰的问题边界。在实际应用中,能否找到定义中的参数至关重要。并且,与参数的可辨识性类似,用于实现调控的参数是否唯一存在是解释机理、设计线路和保证算法有效性的关键。
研究团队进一步证明在满足非退化条件时,目标振荡属性有几个,通常就需要几个独立参数用于调控。这个结论也解释了参数过少和过多分别意味着什么:参数个数少于目标属性数时,一般无法覆盖目标附近的完整属性空间,导致无法实现可调性,而参数过多时,虽然目标仍可能实现,但多余的自由度通常会形成由一簇参数解所构成的低维流形,局部唯一性也随之丧失。因此,目标属性数与调控参数个数相匹配这一结论不仅给出一种理论上的最小配置,也有助于减少实验干预、避免参数冗余和降低计算成本,体现了实用价值。
地毯式搜索还是精确导航?
仅有定义和理论还不足以更好地解决实际问题,如何高效地找到调控所需的参数组是研究团队解决的下一个问题。传统的随机采样或黑箱搜索在参数维数和精度要求提高后计算成本指数级增长,针对每个新系统反复试错或重设计网络结构也难以扩展。研究者们则通过反问题视角先在属性空间中确定调控路线,再利用该路线实现精确导航反推出参数路径(图3)。新方法将传统采样搜索方法关于参数维数的指数级计算复杂度优化为多项式级复杂度。
实现这一思路包含三项关键技术(图4)。首先,通过非线性时间变换引入伪时间把振幅和周期重参数化,使其成为可被方程直接约束的显式变量。其次,用截断傅里叶级数表示周期轨道,并通过谐波平衡把微分方程转化为有限维代数方程。最后,通过延拓和牛顿迭代同步更新傅里叶系数与系统参数从而计算出调控路径。这条路径既可以直接用于调控,也可以研究保持某些属性不变时参数应当沿怎样的低维流形变化,从而揭示保持特定属性不变时多个参数之间潜在的协同变化规律。
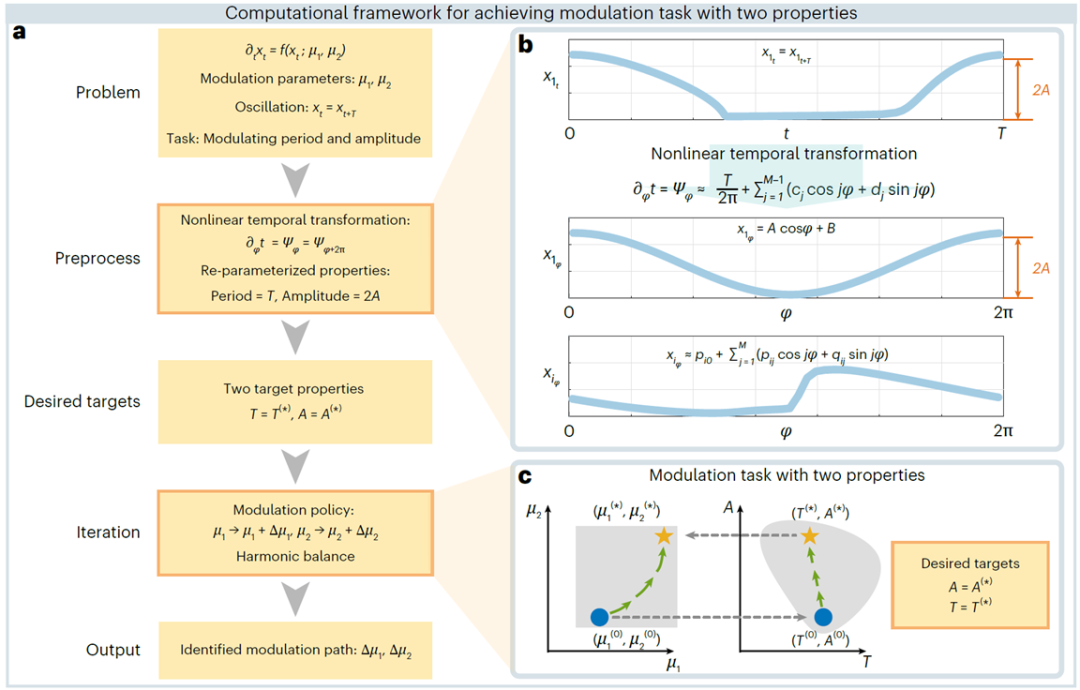
图 4. 计算框架及其关键技术。
与机理模型和振荡数据结合的闭环应用
上述理论与计算框架可被用于实现从数据到模型,再从模型到调控的闭环研究。在一项代表性的数据驱动应用中,团队搭建了一个模拟经典基因抑制振荡器repressilator 的电子电路与机理模型:三个动态电阻-电容单元对应三个相互抑制的组分,从而可以产生振荡动力学(图5)。研究者们把一个电阻值和三个电容量作为四个未知参数,从实测电压时间序列中提取一个周期和三个振幅作为四个目标属性,并把从数据推断参数这一问题转化为属性驱动的调控任务,利用所提框架反推出参数。研究表明,新方法具有较好的稳健性。与经典方法相比,在测试中利用更低的计算成本取得了更优的相对误差。
完成参数推断后,团队又利用所得模型计算电路的调控路径,并回到电子电路中验证(图6)。通过调节电阻值与电容量,实现了指定电压振荡的正交周期调控,即在改变振荡周期的同时保持该通道振幅不变。当任务进一步要求同时固定另一通道的振幅时,唯一性理论准确提示需要增加第三个独立调控参数来实现这一目标。最终,该应用形成了“机制建模—实验数据提取属性—参数推断—调控路径计算—电路调控验证”的闭环。
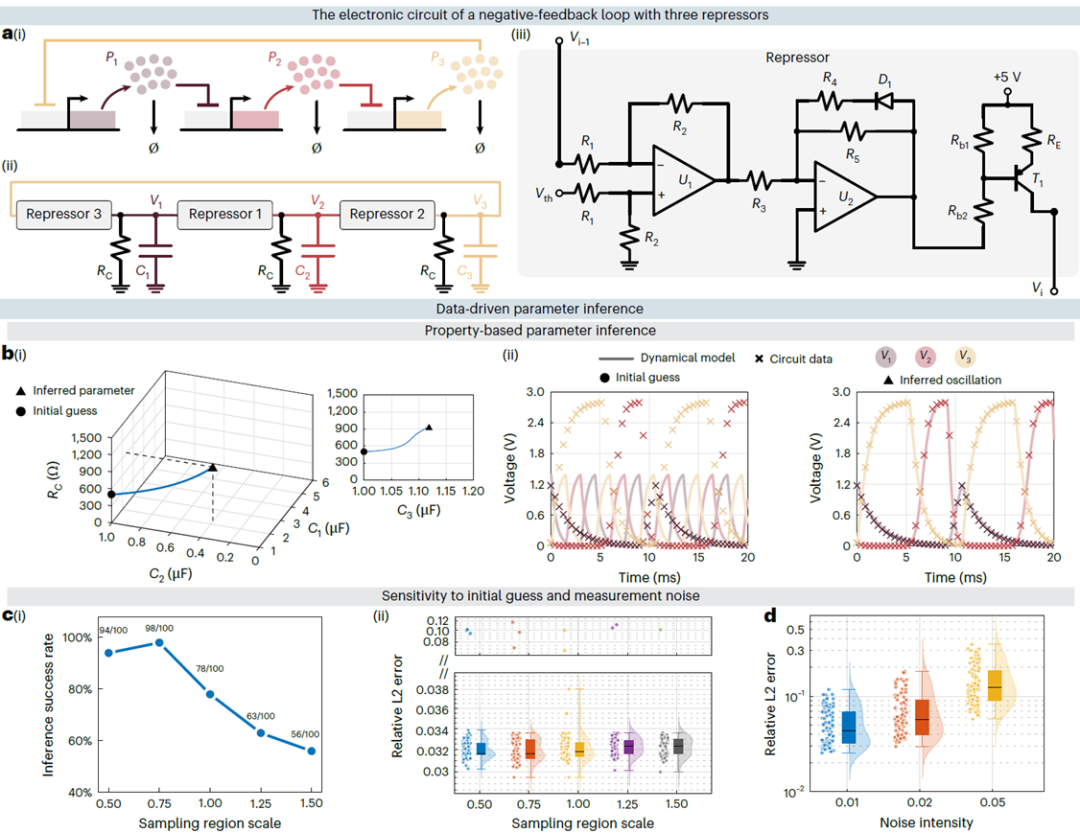
图 5. 计算框架应用于参数推断任务。
复合观测量的调控
该框架还直接回应了开篇提出的生物钟调控问题。在Kim–Forger昼夜节律模型中,研究团队将细胞质和细胞核中的PER蛋白质总量作为复合观测量,在保持24小时周期不变的同时调节其振幅。相关结果在随机扰动下仍保持较好的调控效果,说明该框架不仅适用于单一状态变量,也能够处理由多个状态变量共同构成的复杂生物观测量。
展 望
这项工作为复杂振荡系统建立了从可调性定义、局部唯一性理论到属性驱动反问题算法的系统框架。未来,该框架有望服务于自然振荡系统的机制辨识、干预靶点选择和个性化调控,也可与微流控平台、神经探针等技术结合,用于设计具有指定周期、振幅、极值、相位关系及多属性组合的振荡调控系统。
这项工作也体现了数学理论与计算算法融合研究的价值。围绕复杂振荡系统的实际调控问题,研究团队将可调性与局部唯一性理论、属性驱动的反问题算法和实验验证相结合。理论为算法提供严格依据,算法则使理论能够转化为可计算、可验证的调控方案,二者缺一不可,这种融合对于解决复杂系统与生命科学中的前沿交叉问题至关重要。
论文信息
论文共同第一作者为复旦大学博士毕业生蔡羽桐博士和仲昭月博士,博士生张泽锋参与电子电路搭建,复旦大学智能复杂体系基础理论与关键技术实验室的秦伯韡副研究员和林伟教授为共同通讯作者。该研究得到国家重点研发计划、国家自然科学基金、上海市科学技术委员会、上海市教育委员会、SIMIS及LG实验室的支持。
参考文献
1. Elowitz, M. B. & Leibler, S. A synthetic oscillatory network of transcriptional regulators. Nature 403, 335–338 (2000). https://doi.org/10.1038/35002125
2. Tsai, T. Y.-C. et al. Robust, tunable biological oscillations from interlinked positive and negative feedback loops. Science 321, 126–129 (2008). https://doi.org/10.1126/science.1156951
3. Levine, J. H., Lin, Y. & Elowitz, M. B. Functional roles of pulsing in genetic circuits. Science 342, 1193–1200 (2013). https://doi.org/10.1126/science.1239999
4. Hansen, A. S. & O’Shea, E. K. Limits on information transduction through amplitude and frequency regulation of transcription factor activity. eLife 4, e06559 (2015). https://doi.org/10.7554/eLife.06559
5. Zhang, Z.-B. et al. Design of tunable oscillatory dynamics in a synthetic NF-κB signaling circuit. Cell Systems 5, 460–470.e5 (2017). https://doi.org/10.1016/j.cels.2017.09.016
6. Tomazou, M., Barahona, M., Polizzi, K. M. & Stan, G.-B. Computational redesign of synthetic genetic oscillators for independent amplitude and frequency modulation. Cell Systems 6, 508–520.e5 (2018). https://doi.org/10.1016/j.cels.2018.03.013
7. Ge, T. et al. Achieving modulated oscillations by feedback control. Physical Review E 90, 022909 (2014). https://doi.org/10.1103/PhysRevE.90.022909
8. Qin, B.-W., Zhao, L. & Lin, W. A frequency-amplitude coordinator and its optimal energy consumption for biological oscillators. Nature Communications 12, 5894 (2021). https://doi.org/10.1038/s41467-021-26182-2
9. Zhong, Z., Lin, W. & Qin, B.-W. Modulating biological rhythms: a noncomputational strategy harnessing nonlinearity and decoupling frequency and amplitude. Physical Review Letters 131, 138401 (2023). https://doi.org/10.1103/PhysRevLett.131.138401
10. Zhang, F. et al. Independent control of amplitude and period in a synthetic oscillator circuit with modified repressilator. Communications Biology 5, 23 (2022). https://doi.org/10.1038/s42003-021-02987-1
11. Xiong, J. et al. Quantifying second-messenger information transmission in bacteria. Nature Physics 21, 1009–1018 (2025). https://doi.org/10.1038/s41567-025-02848-2
12. Zhang, R. et al. Decoding frequency-modulated signals increases information entropy in bacterial second messenger networks. Nature Physics 21, 1728–1740 (2025). https://doi.org/10.1038/s41567-025-03030-4
13. Kalman, R. E. On the general theory of control systems. IFAC Proceedings Volumes 1, 491–502 (1960). https://doi.org/10.1016/S1474-6670(17)70094-8
14. Liu, Y.-Y., Slotine, J.-J. & Barabási, A.-L. Controllability of complex networks. Nature 473, 167–173 (2011). https://doi.org/10.1038/nature10011